第 2 讲 · 脑认知的神经基础
认知最终必须由一个物理系统实现。我在这一讲从全脑、脑区、神经网络、细胞到分子逐层下钻,回答两个问题:单个神经元如何产生信号,神经元之间如何传信号。
脑系统不是一张简单的“功能地图”
课件从前脑、中脑、后脑和大脑皮质讲起,并介绍了 Brodmann 分区、运动区、躯体感觉区、视觉区、听觉区和语言相关区。
这些定位提供了起点,但不应理解为“一块皮质 = 一个完整心理功能”。阅读、记忆或决策依赖多区域和长程连接;同一区域也可能在多种任务中参与不同计算。
神经元怎样组成信息链
树突:接收输入
   ↓
胞体:整合多路输入
   ↓
轴丘:是否达到发放阈值
   ↓
轴突:传播动作电位
   ↓
突触末梢:向下一个细胞释放递质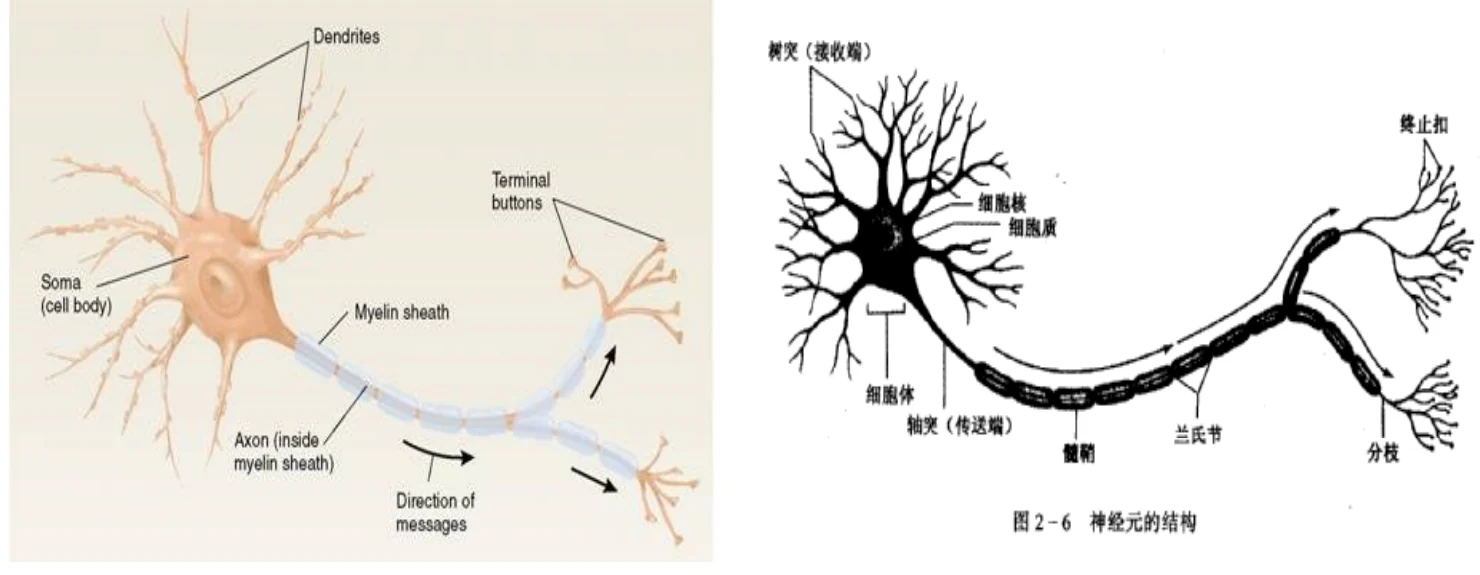
神经元不是把输入原样拷贝到输出。树突和胞体上的兴奋/抑制输入在时间与空间上叠加,只有当轴丘电位到达阈值,才会发放动作电位。
静息膜电位从哪里来
细胞膜把细胞内外两种不同离子环境隔开。关键因素有:
- 细胞内外 、、 等离子浓度不同;
- 膜对不同离子的通透性不同,静息时钾漏通道影响很大;
- 离子同时受浓度梯度和电场驱动;
- 钠钾泵消耗能量,长期维持浓度梯度。
课件把静息膜电位、离子通道和跨膜信号转导放在一起,因为膜电位并不是电池里一个不变的电压,而是浓度、通道开闭和主动转运动态平衡的结果。
动作电位:幅度不编码强弱,时序和频率才编码
达到阈值后,电压门控钠通道快速打开, 内流导致去极化;之后钠通道失活、钾通道打开, 外流使膜电位复极化,可能短暂超极化。
动作电位有“全或无”性质:刺激更强通常不是让单个尖峰更高,而是改变尖峰的频率、时间或群体参与模式。不应把它直接类比为人工神经网络中一个可任意取值的浮点数。
突触传递把电信号转成化学信号,再转回电信号
- 动作电位到达突触前末梢;
- 电压门控钙通道打开, 进入;
- 突触小泡与细胞膜融合,释放神经递质;
- 递质跨过突触间隙,与突触后受体结合;
- 受体改变离子通道或胞内信号通路,产生兴奋或抑制性突触后电位;
- 递质被重摄取、降解或扩散,信号结束。
不同神经递质不能简化为“快乐分子”或“抑郁分子”。其效果取决于受体类型、脑区、时间尺度和网络状态;同一递质在不同回路中可能有不同作用。
从细胞走回认知
动作电位解释了神经元怎样发信号,但不会单独解释“看见一张脸”。认知现象依赖大量细胞之间的连接、可塑性、同步与竞争。下一步必须问:这些活动如何承载对象、规则和经验,这就进入心理表征。